

Θέλετε να διανείμετε τα προϊόντα της Cultifort;
Γίνε διανομέαςΑνάπτυξη και βλάστηση στην καλλιέργεια αβοκάντο
«Ο έλεγχος της ανάπτυξης και της βλάστησης του αβοκάντο αποτελεί ουσιαστικό μέρος του Πλήρους Οδηγού μας για την Καλλιέργεια Αβοκάντο: 10 Βασικές Πτυχές ».
ΙΣΤΟΡΙΚΟ
Το αβοκάντο παρουσιάζει ρυθμική ανάπτυξη, με δύο ή περισσότερες περιόδους ανάπτυξης ανά έτος , που εναλλάσσονται με σύντομες περιόδους αδράνειας. Οι περίοδοι ανάπτυξης μπορεί να είναι φυτικές ή αναπαραγωγικές. Η φυτική έξαψη επιτρέπει στο δέντρο να αυξήσει ή να ανανεώσει τη φωτοσυνθετική του ικανότητα και επίσης να δημιουργήσει νέους οφθαλμούς που στη συνέχεια προκαλούν αναπαραγωγικές έξαρσεις. Οι αναπαραγωγικές έξαρσεις είναι οι βλαστοί ή οι βλαστοί που οδηγούν σε ανθοφορία. Μπορεί να είναι απροσδιόριστες ή καθορισμένες (Alcaraz et al., 2013). Οι απροσδιόριστες έξαρσεις αποτελούνται από την ταξιανθία και τα αντίστοιχα φύλλα της, ενώ οι καθορισμένες έξαρσεις δεν έχουν φύλλα.
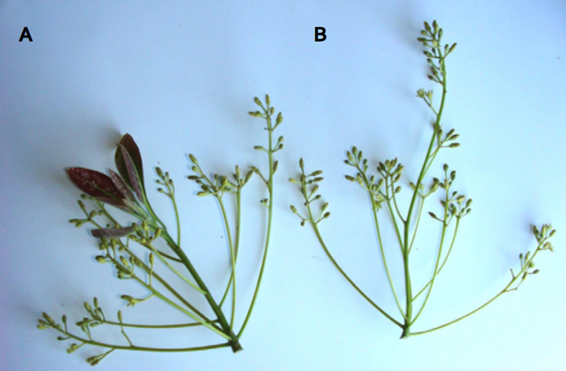
Α. Απροσδιόριστες ταξιανθίες· Β. Προσδιορισμένες ταξιανθίες του P. americana cv. Hass. Πηγή: Alcaraz et al. (2013).
Τα αβοκάντο αναπτύσσονται κυρίως σε τρεις κλιματικές ζώνες : δροσερά, ημι-άνυδρα κλίματα με κυρίως χειμερινές βροχοπτώσεις (Καλιφόρνια, Χιλή, Ισραήλ)· υγρά υποτροπικά κλίματα με κυρίως καλοκαιρινές βροχοπτώσεις (ανατολική Αυστραλία, Μεξικό και Νότια Αφρική)· και τροπικά και υποτροπικά κλίματα με κυρίως καλοκαιρινές βροχοπτώσεις (Βραζιλία, Φλόριντα, Ινδονησία). Διαιρούνται επίσης σε τρεις οικολογικές φυλές: Μεξικανική, Γουατεμάλας και Δυτικοϊνδική . Οι ποικιλίες εντός κάθε φυλής εμφανίζουν γενικά παρόμοιες αντιδράσεις στις κλιματικές και εδαφικές συνθήκες. Ωστόσο, υπάρχουν διαφορές μεταξύ των φυλών και μεταξύ των ποικιλιών όσον αφορά την προσαρμοστικότητά τους στις περιβαλλοντικές συνθήκες (Whiley και Shaffer, 1994), όπως συμβαίνει με την ποικιλία «Hass», ένα υβρίδιο των μεξικανικών και των γουατεμαλικών φυλών, η οποία εμφανίζει χαρακτηριστικά ενδιάμεσα μεταξύ των δύο.
Σε γενικές γραμμές, οι ιδανικές συνθήκες θερμοκρασίας για αυτό το είδος είναι περίπου 25-30ºC για τα άνθη κατά τη διάρκεια της ημέρας και μεταξύ 15 και 20ºC για τα άνθη κατά τη διάρκεια της νύχτας . Θερμοκρασίες άνω των 36ºC προκαλούν σοβαρές ζημιές, ιδιαίτερα στη γονιμοποίηση και την καρπόδεση, καθιστώντας μια κρύα περίοδο (περίπου 10ºC) τον χειμώνα σημαντική για την τόνωση της ανθοφορίας (Galán, 1990).
Η φωτοσυνθετική δραστηριότητα αποτελεί δείκτη ανάπτυξης και παραγωγικότητας των καλλιεργειών. Η ανάπτυξη και η απόδοση εξαρτώνται σε μεγάλο βαθμό από την κατανομή υδατανθράκων . Η αύξηση της απόδοσης σε υποτροπικά είδη με τελική πολυαξονική καρποφορία, όπως το αβοκάντο, αποτελεί πρόκληση για την αγρονομική διαχείριση, καθώς το δέντρο παρουσιάζει μια φυσική τάση προς βλαστική ανάπτυξη, με αποτέλεσμα μεγαλύτερη κατανομή ξηράς ουσίας σε αυτήν την ανάπτυξη εις βάρος της ανάπτυξης των αναπαραγωγικών οργάνων (Wolstenholme, 1990). Περιβαλλοντικοί παράγοντες όπως το φως, η θερμοκρασία και η συγκέντρωση CO2 επηρεάζουν τη φωτοσύνθεση, την αναπνοή και την κατανομή υδατανθράκων.
Η κατανομή των φωτοαφομοιωτικών προϊόντων ρυθμίζεται από τις αλληλεπιδράσεις πηγής-καταβόθρηκα. Οι πηγές είναι εξαγωγείς και οι καταβόθρες είναι καθαροί εισαγωγείς φωτοαφομοιωτικών προϊόντων (Ho, 1988). Η σειρά προτεραιότητας ζήτησης εξαρτάται από τον ρυθμό ανάπτυξης (δραστηριότητα καταβόθρηκα) και το μέγεθος της καταβόθρηκα (αριθμός καρπών). Η σειρά είναι γενικά: σπόρος > πολτός καρπού = άκρες βλαστών και φύλλων > κάμβιο > ρίζες > ιστοί αποθήκευσης (Wolstenholme, 1990). Τα νεαρά φύλλα, ενώ επεκτείνονται, είναι ισχυρές καταβόθρες που ανταγωνίζονται άλλα απαιτητικά φυτικά όργανα μέχρι να φτάσουν στο τελικό τους μέγεθος, οπότε και γίνονται καθαροί εξαγωγείς (Ho, 1988).
Η διαθεσιμότητα του προσπίπτοντος φωτός είναι πιθανώς ο παράγοντας που ασκεί τη μεγαλύτερη επίδραση στη φωτοσύνθεση σε έναν οπωρώνα. Στο αβοκάντο, προς το τέλος της ανάπτυξης των βλαστών την άνοιξη, η μετάδοση του φωτός στη ζώνη καρποφορίας μειώνεται στο 40% του πλήρους φωτισμού, και σε αποστάσεις 0,5 και 1,0 m εντός του θόλου από τη ζώνη καρποφορίας, μειώνεται στο 14% και 10%, αντίστοιχα. Προς το τέλος της ανάπτυξης των βλαστών το καλοκαίρι, η μετάδοση του φωτός στη ζώνη καρποφορίας υπό πλήρη φωτισμό έχει μειωθεί στο 13%, και σε εσωτερικά σημεία (0,5 και 1,0 m) σε 9,7% και 6,3%, αντίστοιχα (Whiley et al., 1992).
Η ένταση και η διάρκεια του φωτός είναι καθοριστικοί παράγοντες για την ανθοφορία (Coutanceau, 1964), και είναι ευρέως γνωστό ότι η ανθοφορία και η καρποφορία είναι λιγότερο άφθονες στη σκιά παρά σε πλήρη ηλιοφάνεια (Meyer, 1960). Όταν τα επίπεδα φωτός είναι χαμηλά σε σχέση με τις απαιτήσεις του δέντρου, η βλαστική ανάπτυξη μειώνεται , τόσο στον αριθμό και το μήκος των βλαστών, όσο και στο μέγεθος των φύλλων, με αποτέλεσμα τη μικρότερη ανάπτυξη του δέντρου και τη μειωμένη φωτοσυνθετική δραστηριότητα . Έτσι, αναπτύσσονται πολυάριθμοι κλάδοι μέσα στο δέντρο, και η πυκνότητα των εξωτερικών κλαδιών μειώνει τη διείσδυση του φωτός και, κατά συνέπεια, την ανθοφορία στο εσωτερικό. Μόνο το εξωτερικό μέρος του θόλου με επαρκές φως παρουσιάζει ικανοποιητική ανθοφορία (Coutanceau, 1964).
ΦΑΙΝΟΛΟΓΙΑ ΚΑΙ ΑΝΑΠΤΥΞΗ
Το αβοκάντο χαρακτηρίζεται από μονοποδική ρυθμική ανάπτυξη, δηλαδή από την ανάπτυξη ενός τερματικού βλαστικού οφθαλμού από τον κεντρικό άξονα κάθε βλαστού που παραμένει και συνεχίζει την ανάπτυξή του χρόνο με το χρόνο, και αποτελεί παράδειγμα του αρχιτεκτονικού μοντέλου Rauh, ενός από τα πιο συχνά σε εύκρατες και τροπικές ζώνες.
Ο κορμός σχηματίζει κλαδιά που είναι μορφογενετικά πανομοιότυπα με τον κορμό και τα άνθη ξεκινούν πλευρικά χωρίς να επηρεάζουν την ανάπτυξη των βλαστών, αν και σε ορισμένους βλαστούς υπάρχουν άνθη σε τελική θέση, με την επακόλουθη ανάπτυξη να είναι συμποδιακή (Thorp και Sedgley, 1992).
Οι οφθαλμοί μπορεί να είναι μασχαλιαίοι ή κορυφαίοι. Το δέντρο αναπτύσσεται κυρίως από τους κορυφαίους οφθαλμούς, καθώς οι μασχαλιαίοι οφθαλμοί είτε μαραίνονται είτε παραμένουν αδρανείς (Calabrese, 1992). Η ζωντάνια της συνολικής ανάπτυξης του δέντρου και η παραγωγή καρπών εξαρτώνται από το χρόνο και την έκταση των φαινολογικών γεγονότων, τα οποία ελέγχονται από τη διαθεσιμότητα και την κατανομή άνθρακα και ενέργειας (Wolstenholme και Whiley, 1989) σε απόκριση στις περιβαλλοντικές συνθήκες (Scholefield et al., 1985). Τα φύλλα χρειάζονται περίπου 40 ημέρες από την εμφάνιση των οφθαλμών μέχρι τη μετάβαση από την καταβόθρα στην πηγή (Whiley, 1990). Κατά τη διάρκεια αυτής της περιόδου, μπορεί να ανταγωνίζονται για φωτοαφομοίωση με τους αναπτυσσόμενους καρπούς (Cutting και Bower, 1990).
Καθ' όλη τη διάρκεια του έτους, το αβοκάντο μπορεί να έχει έναν ή περισσότερους βλαστικούς κύκλους που ακολουθούνται από μια περίοδο ανάπτυξης ριζών . Οι ρίζες αρχίζουν να αναπτύσσονται όταν η πρώτη βλαστική ανάπτυξη αρχίζει να μειώνεται. Στη συνέχεια, ξεκινά μια δεύτερη περίοδος βλαστικής ανάπτυξης, αποκαθιστώντας έτσι την ισορροπία μεταξύ μιας φάσης ανάπτυξης ριζών και μιας βλαστικής φάσης (Calabrese, 1992).
Το αβοκάντο είναι ένα οπωροφόρο δέντρο με έντονη εναλλαγή συγκομιδών , όπου οι βέλτιστες κλιματικές συνθήκες για την καρπόδεση θα παράγουν ένα έτος υψηλής συγκομιδής, το οποίο θα ακολουθείται από ένα έτος χαμηλής παραγωγής και, αντίθετα, ένα έτος με κλιματικές συνθήκες που παράγουν υψηλή πτωτική τάση ανθέων ή/και καρπών, θα οδηγήσει σε ένα έτος χαμηλής παραγωγής και, στη συνέχεια, το επόμενο έτος, θα αυξήσει την ανθοφορία και, κατά συνέπεια, τη συγκομιδή (Lovatt, 2004).
Η ανθοφορία και η ανάπτυξη των καρπών χρησιμοποιούν μεγάλες ποσότητες υδατανθράκων, επομένως μια ανεπάρκεια θα περιόριζε αυτές τις διαδικασίες και θα οδηγούσε σε ένα έτος χαμηλής παραγωγής. Με άλλα λόγια, ένα υψηλό φορτίο καρπών θα ήταν η κύρια αιτία μειωμένης συσσώρευσης υδατανθράκων κατά τη διάρκεια του φθινοπώρου και του χειμώνα, με αποτέλεσμα χαμηλή ανθοφορία και υπερβολική βλαστική ανάπτυξη το επόμενο έτος . Αντίθετα, κατά τη διάρκεια ενός έτους χαμηλής παραγωγής, τα δέντρα θα συσσώρευαν υψηλότερα επίπεδα υδατανθράκων κατά τη διάρκεια του φθινοπώρου και του χειμώνα, με αποτέλεσμα έντονη ανθοφορία (Paz Vega, 1997).
Οι Scholefield et al. (1985) αναφέρουν ότι η συγκέντρωση υδατανθράκων είναι ελάχιστη το φθινόπωρο, γεγονός που συμπίπτει με τη μείωση της βλαστικής δραστηριότητας , με αποτέλεσμα τον μικρότερο ανταγωνισμό μεταξύ της βλαστικής και της αναπαραγωγικής ανάπτυξης . Αυτοί οι συγγραφείς υποδεικνύουν ότι, κατά συνέπεια, η έναρξη της ανθικής ανάπτυξης στο αβοκάντο συμβαίνει όταν τα επίπεδα υδατανθράκων βρίσκονται στο χαμηλότερο σημείο τους, δημιουργώντας έτσι μια στενή σχέση μεταξύ των επιπέδων υδατανθράκων και της έναρξης της ανθικής ανάπτυξης. Τα χαμηλά επίπεδα υδατανθράκων θα μπορούσαν να είναι η αιτία της διακοπής της βλαστικής ανάπτυξης και, σε μεγαλύτερο βαθμό, ο καθοριστικός παράγοντας στην έναρξη της ανθικής ανάπτυξης.
Στα αβοκάντο, η βλαστική ανάπτυξη συμβαίνει ακριβώς όταν τα επίπεδα αποθεμάτων στα κλαδιά είναι πολύ χαμηλά . Τα υψηλότερα επίπεδα αποθεμάτων αμύλου στο ξύλο βρίσκονται τον χειμώνα, που συμπίπτει με την παύση της βλαστικής ανάπτυξης. Αυτά τα αποθέματα μειώνονται ραγδαία κατά την ανθοφορία, φτάνοντας στα χαμηλότερα επίπεδά τους κατά τη διάρκεια του καλοκαιριού, οπότε και συμβαίνει η αποκοπή των καρπών (Whiley και Wolstenholme, 1990). Αυτή η χειμερινή συσσώρευση αμύλου καθορίζει τη διατήρηση των καρπών στο δέντρο.
Οι Scholefield et al. (1985) αναφέρουν ότι η συγκέντρωση υδατανθράκων είναι ελάχιστη το φθινόπωρο, γεγονός που συμπίπτει με τη μείωση της βλαστικής δραστηριότητας , με αποτέλεσμα τον μικρότερο ανταγωνισμό μεταξύ της βλαστικής και της αναπαραγωγικής ανάπτυξης . Αυτοί οι συγγραφείς υποδεικνύουν ότι, κατά συνέπεια, η έναρξη της ανθικής ανάπτυξης στο αβοκάντο συμβαίνει όταν τα επίπεδα υδατανθράκων βρίσκονται στο χαμηλότερο σημείο τους, δημιουργώντας έτσι μια στενή σχέση μεταξύ των επιπέδων υδατανθράκων και της έναρξης της ανθικής ανάπτυξης. Τα χαμηλά επίπεδα υδατανθράκων θα μπορούσαν να είναι η αιτία της διακοπής της βλαστικής ανάπτυξης και, σε μεγαλύτερο βαθμό, ο καθοριστικός παράγοντας στην έναρξη της ανθικής ανάπτυξης.
Στα αβοκάντο, η βλαστική ανάπτυξη συμβαίνει ακριβώς όταν τα επίπεδα αποθεμάτων στα κλαδιά είναι πολύ χαμηλά . Τα υψηλότερα επίπεδα αποθεμάτων αμύλου στο ξύλο βρίσκονται τον χειμώνα, που συμπίπτει με την παύση της βλαστικής ανάπτυξης. Αυτά τα αποθέματα μειώνονται ραγδαία κατά την ανθοφορία, φτάνοντας στα χαμηλότερα επίπεδά τους κατά τη διάρκεια του καλοκαιριού, οπότε και συμβαίνει η αποκοπή των καρπών (Whiley και Wolstenholme, 1990). Αυτή η χειμερινή συσσώρευση αμύλου καθορίζει τη διατήρηση των καρπών στο δέντρο.
Σε απροσδιόριστες ταξιανθίες, τα φύλλα ανταγωνίζονται για φωτοαφομοίωση με τα άνθη και τους αναπτυσσόμενους καρπούς μέχρι να φτάσουν τα 2/3 της συνολικής τους επέκτασης (Whiley, 1990). Μόλις αρχίσουν να αναπτύσσονται οι καρποί, η κατεύθυνση της μεταφοράς φωτοαφομοίωσης αλλάζει υπέρ της ανάπτυξης των καρπών (Ho, 1992).
Ένα επιπλέον γεγονός που χρησιμοποιείται για να υποστηρίξει την υπόθεση ότι η διαθεσιμότητα υδατανθράκων θα μπορούσε να είναι ο ρυθμιστής στον κύκλο της εναλλασσόμενης καρποφορίας είναι η υψηλή περιεκτικότητα σε λάδι των αβοκάντο, η συσσώρευση των οποίων είναι ενεργειακά πολύ δαπανηρή. Σε σύγκριση με άλλα φρούτα, όπως τα μήλα, τα πορτοκάλια και οι μπανάνες, οι ποσότητες σακχάρων που αποθηκεύουν είναι πολύ χαμηλότερες, αλλά η υψηλή περιεκτικότητά τους σε λάδι θα μπορούσε να εξηγήσει τη δραστική μείωση των αποθεμάτων υδατανθράκων σε ένα έτος υψηλής παραγωγής.
Είναι επίσης αποδεκτό ότι η εναλλασσόμενη καρποφορία σχετίζεται με τον ρόλο των ρυθμιστών ανάπτυξης που παράγονται από τους σπόρους (GGRs) στην αναστολή της ανθοφορίας το επόμενο έτος (Paz Vega, 1997). Στο αβοκάντο, το γιββερελλικό οξύ που παράγεται από το ενδοκάρπιο του καρπού έχει συνδεθεί με μειωμένη ανθοφορία και παραγωγή καρπών (Martens et al., 1994). Από αυτή την άποψη, ο ρόλος των αποθεμάτων υδατανθράκων τίθεται υπό αμφισβήτηση (Liu et al., 1999).
Οι Scholefield et al. (1985) αναφέρουν ότι η διακοπή της βλαστικής ανάπτυξης σχετίζεται με τη μείωση της παραγωγής γιββερελλινών , επιτρέποντας την έναρξη των ανθοφόρων μπουμπουκιών, και, αφετέρου, οι καρποί χαρακτηρίζονται από την έντονη μεταβολική τους απαίτηση.
Γενικά, μπορούμε να συμπεράνουμε ότι πολλοί παράγοντες δυσχεραίνουν τη μελέτη της εναλλαγής γονόρροιας και τη σχέση της με την βλαστική ανάπτυξη , όπως διατροφικοί, ορμονικοί και κλιματικοί παράγοντες , καθώς και άλλοι παράγοντες που προέρχονται από ενδογενείς αντιδράσεις που εμπλέκονται στον ανταγωνισμό μεταξύ των αναπτυσσόμενων οργάνων. Ωστόσο, μπορούμε να αποτρέψουμε την εντονότερη έκφρασή της αντιμετωπίζοντας τους παράγοντες που μπορούμε να ελέγξουμε, όπως οι διατροφικοί παράγοντες.
Τέλος, αξίζει να σημειωθεί ότι το άμυλο και τα διαλυτά σάκχαρα είναι οι κυρίαρχοι εφεδρικοί υδατάνθρακες για την παροχή ενέργειας για ανάπτυξη (Dey και Dixon, 1985).
ΣΥΣΤΑΣΗ
Ως εκ τούτου, το τεχνικό τμήμα της Cultifort συνιστά τη διατροφική διαχείριση κατά τα στάδια της υψηλότερης ζήτησης για αβοκάντο, έτσι ώστε η βλαστική ανάπτυξη, η ανθοφορία και η καρπόδεση να επηρεάζονται μόνο από παράγοντες πέρα από τον ανθρώπινο έλεγχο.
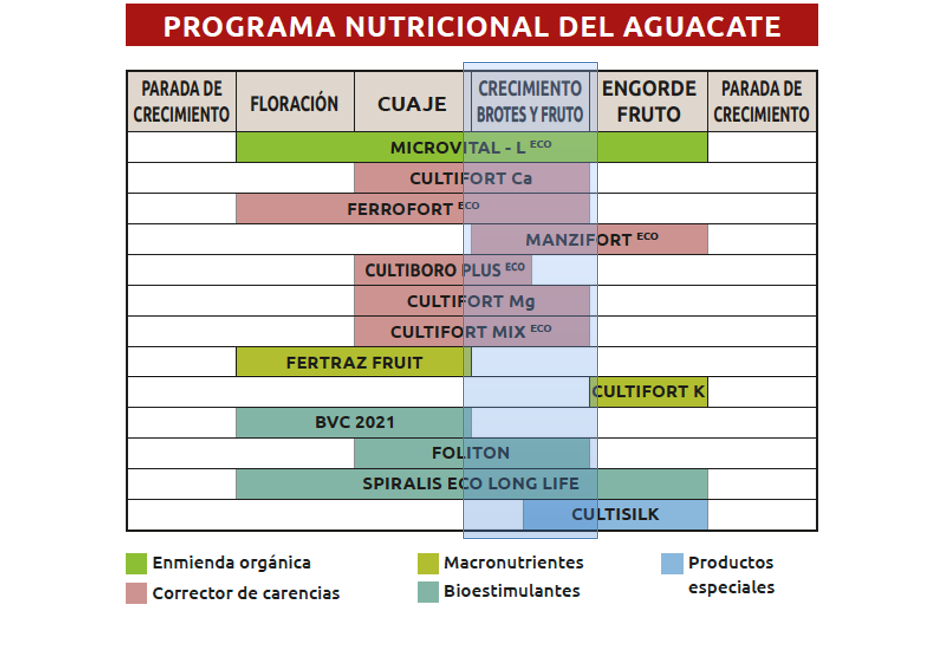
Πρόγραμμα διατροφής για ανάπτυξη και βλάστηση αβοκάντο
Για περισσότερες πληροφορίες σχετικά με την καλλιέργεια αβοκάντο: συμβουλές ειδικών και ένα άλλο άρθρο που μπορεί να σας ενδιαφέρει: προληπτικές θεραπείες κατά της καρπόπτωσης
Η Cultifort προσφέρει μια μεγάλη γκάμα βιοδιεγερτικών, διορθωτικών ελλείψεων, οργανικών τροποποιητικών και άλλων ειδικών προϊόντων για την κάλυψη των αναγκών των αβοκάντο σε κάθε φαινολογικό τους στάδιο.
Στην τρέχουσα φαινολογική φάση, την ανάπτυξη βλαστών και καρπών , είναι σημαντικό να ληφθούν υπόψη τα σημεία που αναφέρθηκαν προηγουμένως: υπάρχει σημαντικός ανταγωνισμός για φωτοαφομοιώσεις ή υδατάνθρακες μεταξύ των αναπτυσσόμενων καρπών και των νεαρών φύλλων και βλαστών. Αυτός ο ανταγωνισμός μπορεί επίσης να οδηγήσει σε αυξημένη φυσιολογική πτώση καρπών εάν δεν αντιμετωπιστεί σωστά. Επομένως, συνιστάται ιδιαίτερα η διόρθωση τυχόν διατροφικών ελλείψεων και η εφαρμογή μέτρων βιοδιέγερσης κατά τη διάρκεια αυτού του κρίσιμου σταδίου.
Ως βάση για αυτήν την περίοδο, συνιστάται η βελτίωση των εδαφικών συνθηκών , καθώς έχουμε ήδη δει ότι για να είναι αποτελεσματική η βλαστική ανάπτυξη , πρέπει να συνδέεται με την καλή ανάπτυξη των ριζών . Το MICROVITAL – L , ένα υγρό σκεύασμα πλούσιο σε οργανικά οξέα, μόρια φλαβονοειδών, μαγνήσιο και μικροθρεπτικά συστατικά , είναι ένας φυτικός βιολογικός ενεργοποιητής εδάφους που, εκτός από τη βελτίωση των φυσικοχημικών παραμέτρων , δρα ως πρεβιοτικό, διεγείροντας την ανάπτυξη της μικροπανίδας του εδάφους . Αυτά τα αποτελέσματα επιτυγχάνονται χάρη σε:
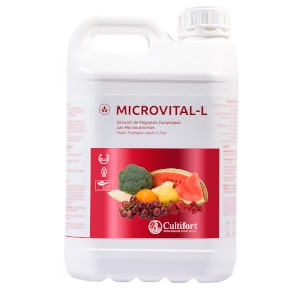
- Ο οργανικά οξέα, σε μορφές άμεσα αφομοιώσιμες από το φυτό (σε αντίθεση με άλλα οργανικά οξέα)
- Και μόρια φλαβονοειδών, οι οποίες, ως πολυφαινόλες, διαθέτουν αντιοξειδωτικές ιδιότητεςβοηθώντας το φυτό να παραμείνει πιο φωτοσυνθετικά ενεργό, καθυστέρηση της γήρανσης των φύλλων και ασκώντας ένα προστατευτική δράση Μπορούν να αντέξουν σε διάφορους τύπους αβιοτικού στρες, όπως η υπεριώδης ακτινοβολία. Διαθέτουν επίσης ιδιότητες χηλίωσης σιδήρου και άλλων μετάλλων, επομένως η χρήση MICROVITAL – L συμβάλλει στην κινητοποίηση θρεπτικών συστατικών που υπάρχουν στο έδαφος.
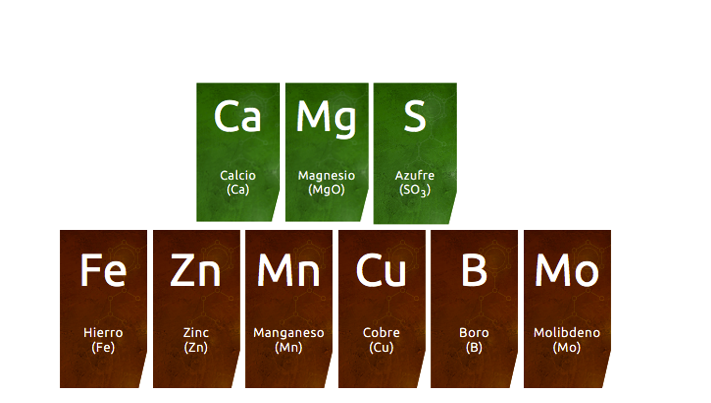
Επιπλέον, το MICROVITAL – L διορθώνει και αποτρέπει τις ελλείψεις σε μαγνήσιο, βόριο, σίδηρο, μαγγάνιο και ψευδάργυρο . Αυτό έχει ως αποτέλεσμα ένα πιο πράσινο, πιο μεταβολικά ενεργό φυτό με βελτιωμένη ανάπτυξη - εν ολίγοις, ένα πιο υγιές και δυνατότερο φυτό συνολικά.
Στη γκάμα των διορθωτικών ελλείψεων , η Cultifort διαθέτει όλα τα είδη διατροφικών διαλυμάτων: μαγνήσιο, ασβέστιο, σίδηρο, βόριο, ψευδάργυρο, μαγγάνιο, μολυβδαίνιο κ.λπ. , διαμορφώνοντάς τα όλα με την πιο αποτελεσματική τεχνολογία για τη σωστή και μέγιστη αφομοίωσή τους , χρησιμοποιώντας διαφορετικά χηλικά και συμπλεκτικά μέσα, μαζί με υδατάνθρακες, οργανικά πολυοξέα, πολυκαρβοξυλικά οξέα, πολυσακχαρίτες και αναγωγικά σάκχαρα.
Σε επίπεδο βιοδιέγερσης, το FOLITON είναι ένα βιοδιεγερτικό με υψηλή περιεκτικότητα σε πρωτεϊνογόνα L-αμινοξέα, τόσο ελεύθερα όσο και συνδυασμένα με τη μορφή πεπτιδίων και πολυπεπτιδίων , τα οποία επιτρέπουν στο αβοκάντο να εξοικονομεί ενέργεια κατά τον σχηματισμό πρωτεϊνών, ειδικά όταν υπάρχουν υψηλές διατροφικές απαιτήσεις. Είναι ένα υγρό σκεύασμα που αφομοιώνεται και μεταφέρεται γρήγορα μέσα στο φυτό. Η εφαρμογή του διεγείρει έντονα τον μεταβολισμό των φυτών όταν απαιτείται αυξημένη βλαστική δραστηριότητα. Η συνδυασμένη δράση των συστατικών του προάγει τη σύνθεση πρωτεϊνών και υδατανθράκων , ξεκινά τη φυσιολογική δραστηριότητα του φυτού και διεγείρει τον σχηματισμό φύλλων και ανθέων, μειώνοντας τον ανταγωνισμό μεταξύ τους.
Το SPIRALIS Long Life είναι ένα σκεύασμα ειδικών οργανικών οξέων σε συνδυασμό με ένα σύμπλεγμα επιλεγμένων πεπτιδίων που σχετίζονται με τα κόκκινα ( Gellidium ) και πράσινα ( Spirulina ) μικροφύκη. Η λειτουργικότητά του βασίζεται στην πρόκληση και ενίσχυση της τοπικής και συστηματικής ενδογενούς αύξησης μορίων με υψηλή αμυντική ικανότητα (αλκαλοειδή, θειονίνες, φυτοαλεξίνες, πρωτεΐνες PR, κ.λπ.). Επιπλέον, προκαλεί δομικές αλλαγές στα κυτταρικά τοιχώματα των φυτών στο επίπεδο της λιγνινοποίησης , αποτελώντας έτσι ένα φυσικό φράγμα κατά του αβιοτικού στρες. Διεγείρει ιδιαίτερα τα επίπεδα Συστημικής Επίκτητης Αντίστασης (SAR) και Συστημικής Επαγόμενης Αντίστασης (SIR) στα φυτά έναντι μυκήτων και βακτηρίων, μεταξύ άλλων. Η χρήση του συνιστάται πριν από καταστάσεις κινδύνου ή/και όσο επιμένουν συνθήκες ευνοϊκές για την ανάπτυξη ασθενειών. Η αντιμυκητιασική και αντιβακτηριακή δράση ευρέος φάσματος, σε επίπεδο πρόληψης , και η επίδρασή του στη βελτίωση της μετασυλλεκτικής ζωής των καρπών, καθιστούν το SPIRALIS Long Life ένα από τα πιο ολοκληρωμένα και τεχνικά προϊόντα στον κατάλογο Cultifort.
Αλλά είναι επίσης σκόπιμο να προστατεύσετε το αβοκάντο από διαφορετικά είδη στρες που μπορεί να προκύψουν κατά τη διάρκεια αυτής της φάσης, είτε στο επίπεδο της ρίζας είτε στο επίπεδο του φυλλώματος.
Το OXIFORT είναι ένα προϊόν που, όταν εφαρμόζεται με νερό άρδευσης, απελευθερώνει αργά οξυγόνο , βελτιώνοντας τον αερισμό στη ριζική ζώνη, σταματώντας την ασφυξία των ριζών και αναστέλλοντας την ανάπτυξη αναερόβιων μικροοργανισμών. Βελτιώνει επίσης τη δομή του εδάφους, αυξάνοντας το πορώδες και επιτρέποντας καλύτερη κυκλοφορία αέρα και νερού μέσω του χώρου των πόρων . Αυτό ενισχύει την αποτελεσματικότητα των λιπασμάτων, ιδιαίτερα των αζωτούχων λιπασμάτων, και προάγει την ανάπτυξη ωφέλιμων μικροοργανισμών που εμπλέκονται στον μετασχηματισμό και την κινητοποίηση των θρεπτικών συστατικών του εδάφους . Το OXIFORT είναι κρίσιμο επειδή αποτρέπει το στρες που προκαλείται από την ασφυξία των ριζών. Η καλλιέργεια αβοκάντο είναι εξαιρετικά ευαίσθητη στην υπερβολική υγρασία του εδάφους. Η ασφυξία των ριζών μπορεί να συμβεί είτε λόγω κακής διαχείρισης άρδευσης είτε λόγω υπερβολικών βροχοπτώσεων σε περιόδους χαμηλότερης ζήτησης νερού. Σε κάθε περίπτωση, υπάρχει μια περίοδος περίπου 90-100 ημερών μετά την ανθοφορία και την καρπόδεση, κατά την οποία αυτή η καλλιέργεια είναι ιδιαίτερα ευαίσθητη στην υπερβολική υγρασία, ενδεχομένως υποφέροντας από στρες ασφυξίας των ριζών που προκαλεί άμεσα μαζική πτώση των καρπών . Για την ελαχιστοποίηση του κινδύνου τέτοιων καταστάσεων, συνιστάται η φύτευση αβοκάντο σε χαλαρά, καλά στραγγιζόμενα εδάφη με όγκο μακροπόρων μεγαλύτερο από 17% (ιδανικό είναι το 24%), σε ελάχιστο βάθος, με προσεκτικό σχεδιασμό της απορροής νερού από το οικόπεδο για την αποφυγή συσσώρευσης στις χαμηλότερες περιοχές και εφαρμογή αποτελεσματικής διαχείρισης άρδευσης για τη βελτιστοποίηση της εφαρμογής νερού και της οξυγόνωσης του εδάφους.
Το CultisilK είναι ένα σκεύασμα με βάση το πυριτικό κάλιο που ενσωματώνει επίσης ελεύθερα αμινοξέα. Το πυρίτιο δημιουργεί ένα προστατευτικό στρώμα στο φυτό για να το προστατεύει από την υπερβολική θερμότητα και τη φθορά από τον ήλιο. Το κάλιο ρυθμίζει τη λειτουργία των στομάτων , βοηθώντας στη διατήρηση της κυτταρικής σπαργής και αποτρέποντας την υπερβολική απώλεια νερού μέσω της διαπνοής. Τα ελεύθερα αμινοξέα ενισχύουν τη σύνθεση χλωροφύλλης και ενεργοποιούν τη φωτοσύνθεση , αποτρέποντας τις διακοπές στη σύνθεση αφομοίωσης και διασφαλίζοντας ότι ο ανταγωνισμός μεταξύ καρπών και αναπτυσσόμενων βλαστών δεν επιδεινώνεται. Ως πηγή καλίου και πυριτίου, βελτιώνει την ανάπτυξη των φυτών και ενισχύει την αντοχή τους σε περιβαλλοντικούς παράγοντες ενισχύοντας τη φυσική τους άμυνα . Το πυρίτιο είναι ένα δομικό στοιχείο που ενισχύει τα κυτταρικά τοιχώματα, ενισχύοντας τη φυσική υποστήριξη του φυτού και προστατεύοντάς το από εξωτερικούς παράγοντες. Επιπλέον, έχει συνέργειες με ασβέστιο, μαγνήσιο και κάλιο , βελτιώνοντας την απορρόφηση και τη μεταφορά τους στο φυτό.
Συνοψίζοντας, στην Cultifort προσφέρουμε ένα ευρύ φάσμα διατροφικών λύσεων με συγκεκριμένες λειτουργίες που έχουν σχεδιαστεί για να βελτιώνουν τις αποδόσεις των καλλιεργειών αποτελεσματικά και οικολογικά. Επιπλέον, ο κατάλογός μας περιλαμβάνει μόνο προϊόντα "μηδενικών υπολειμμάτων".
ΠΑΡΑΠΟΜΠΕΣ
Alcaraz, M.· Thorp, T. και Hormaza, J. (2013). Φαινολογικά στάδια ανάπτυξης του αβοκάντο (Persea Americana) σύμφωνα με την κλίμακα BBC. Scientia Hortícolae, 164, 434-439. https://doi.org/10.1016/j. scienta.2013.09.051.
Calabrese, F. 1992. Το αβοκάντο. Μαδρίτη. Εκδόσεις Mundi-Prensa. 249 σελ.
Coutanceau, M. 1964. Οπωροκαλλιέργεια. Ισπανία, Δυτικές Εκδόσεις. 108 σελ.
Κοπή, JG και Bower, JP 1990. Αφαίρεση φυτών την άνοιξη: η επίδραση στο μέγεθος της απόδοσης, τη σύνθεση και την ποιότητα των καρπών σε ανόργανα άλατα. South African Avocado Growers' Association Yearbook 13, 33-34.
Dey, PM και Dixon, RA 1985. Βιοχημεία Αποθηκευτικών Υδατανθράκων σε Πράσινα Φυτά, 1-51. Dey, P. M. και Dixon, R. A. (Επιμ.). Academic Press, Λονδίνο.
Ho, LC 1988. Μεταβολισμός και διαμερισματοποίηση εισαγόμενων σακχάρων σε όργανα καταβόθρων σε σχέση με την ισχύ καταβόθρων. Ann. Rev. Plant Physiol. 39, σελ. 355–378.
Ho, LC 1992. Ανάπτυξη καρπών και αντοχή στην βύθιση. Στο: Παραγωγή καρποδέσμων: Όψεις ανάπτυξης, περιβαλλοντικής φυσιολογίας και οικολογίας. Marshall, C., και Grace J. (Επιμ.). Cambridge Univ. Press. Μεγάλη Βρετανία. σελ.: 101-124.
Galán-Sauco, V. 1990. Τροπικά οπωροφόρα δέντρα στις υποτροπικές περιοχές (Avocado-mango-Litchi Logan). Ισπανία. Εκδόσεις Mundi-Prensa. 133 σελ.
Liu, X., Robinson, P., Madore, M., Witney, G. και Arpaia, M. 1999a. Διακυμάνσεις υδατανθράκων στο αβοκάντο Hass. I. Ανάπτυξη και φαινολογία. Journal of the American Society for Horticultural Science 124: 671-675.
Lovatt, C. 2004. Εξάλειψη της εναλλασσόμενης ωοτοκίας του αβοκάντο "Hass". Πρακτικά του Συμποσίου Έρευνας για το Αβοκάντο στην Καλιφόρνια, 30 Οκτωβρίου 2004. Πανεπιστήμιο της Καλιφόρνια, Riverside. Επιτροπή Αβοκάντο της Καλιφόρνια. Σελίδες 89-95.
Martens, D.A., S. Luck, και W.T. Frankenberger, Jr. 1994. Ο ρόλος των ρυθμιστών ανάπτυξης των φυτών στην βλαστική έκχυση την άνοιξη, την ανθοφορία και την καρπόπτωση στο αβοκάντο (Persea Americana Mill.). Spec. Rpt. Qual. Avocado Dev.Org., Καλιφόρνια. Avocado Soc., Saticoy.
Meyer, B. 1960. Εισαγωγή στη φυσιολογία των φυτών. Μπουένος Άιρες, Eudeba. 57 Op.
Paz-Vega, S. 1997. Εναλλασσόμενη καρποφορία στο αβοκάντο (Persea Americana mill). California Avocado Society Yearbook 81: 117-148.
Scholefield, PB, Sedgley M. και Alexander, D.McE., 1985. Κύκλος υδατανθράκων σε σχέση με την ανάπτυξη βλαστών, την έναρξη και ανάπτυξη των ανθέων και την απόδοση στο αβοκάντο. Scientia Horticulturee 25, 99-110.
Thorp; T, και Sedgley, M. 1992. Ανάπτυξη βλαστών και αρχιτεκτονική δέντρων σε διάφορες ποικιλίες αβοκάντο. Στο: Πρακτικά του Δεύτερου Παγκοσμίου Συνεδρίου Αβοκάντο. Καλιφόρνια 1992. σελ. 237-240.
Whiley, AW, 1990. Αφομοίωση CO2 σε αναπτυσσόμενους βλαστούς φρούτων του αβοκάντο cv Hass (Persea Americana Mili.) – Προκαταρκτική έκθεση. SA Avocado Growers' Assn. Yrbk. 13:28-30.
Whiley, AW και Schaffer, B. 1994. Αβοκάντο. Στο: Schaffer, B., Anderson, P. (επιμ.). Εγχειρίδιο Περιβαλλοντικής Φυσιολογίας των Φρούτων, Τόμος 2. Υποτροπικές και Τροπικές Καλλιέργειες. CRC Press, Μπόκα Ρατόν, Φλόριντα. Σελ. 3-35.
Whiley AW, Schaffer, B. και Lara, SP 1992. Ανταλλαγή διοξειδίου του άνθρακα σε αναπτυσσόμενους καρπούς αβοκάντο (Persea Americana Mill.). Tree Physiology 11, 85-94.
Whiley, AW, και BN, Wolstenholme. 1990. Διαχείριση υδατανθράκων σε δέντρα αβοκάντο για αυξημένη παραγωγή. Επετηρίδα του Συνδέσμου Καλλιεργητών Αβοκάντο της Νότιας Αφρικής 13: 25 – 27.
Wolstenholme BN 1990. Κατανομή πόρων και ανταγωνισμός φυτικής αναπαραγωγής: ευκαιρίες χειραγώγησης σε αειθαλή οπωροφόρα δέντρα. Acta Horticulturee 275:451-459.
Wolstenholme, BN και Whiley, AW 1989. Υδατανθρακικοί και φαινολογικοί κύκλοι ως εργαλεία διαχείρισης για οπωρώνες αβοκάντο. Ένωση Καλλιεργητών Αβοκάντο Νότιας Αφρικής. Yrbk. 12: 33-37.